
Teoria · Cor e classe
A cor propõe a classe, você confere.
No tetrazólio, o embrião vivo fica vermelho. Medir esse vermelho numa imagem pede três decisões: em que espaço de cor medir, como tirar a média de um ângulo e o que uma média nunca vai ver. Esta página mostra as três com 1.614 sementes reais de orquídea.
Entender · visual
Uma placa, duas classes
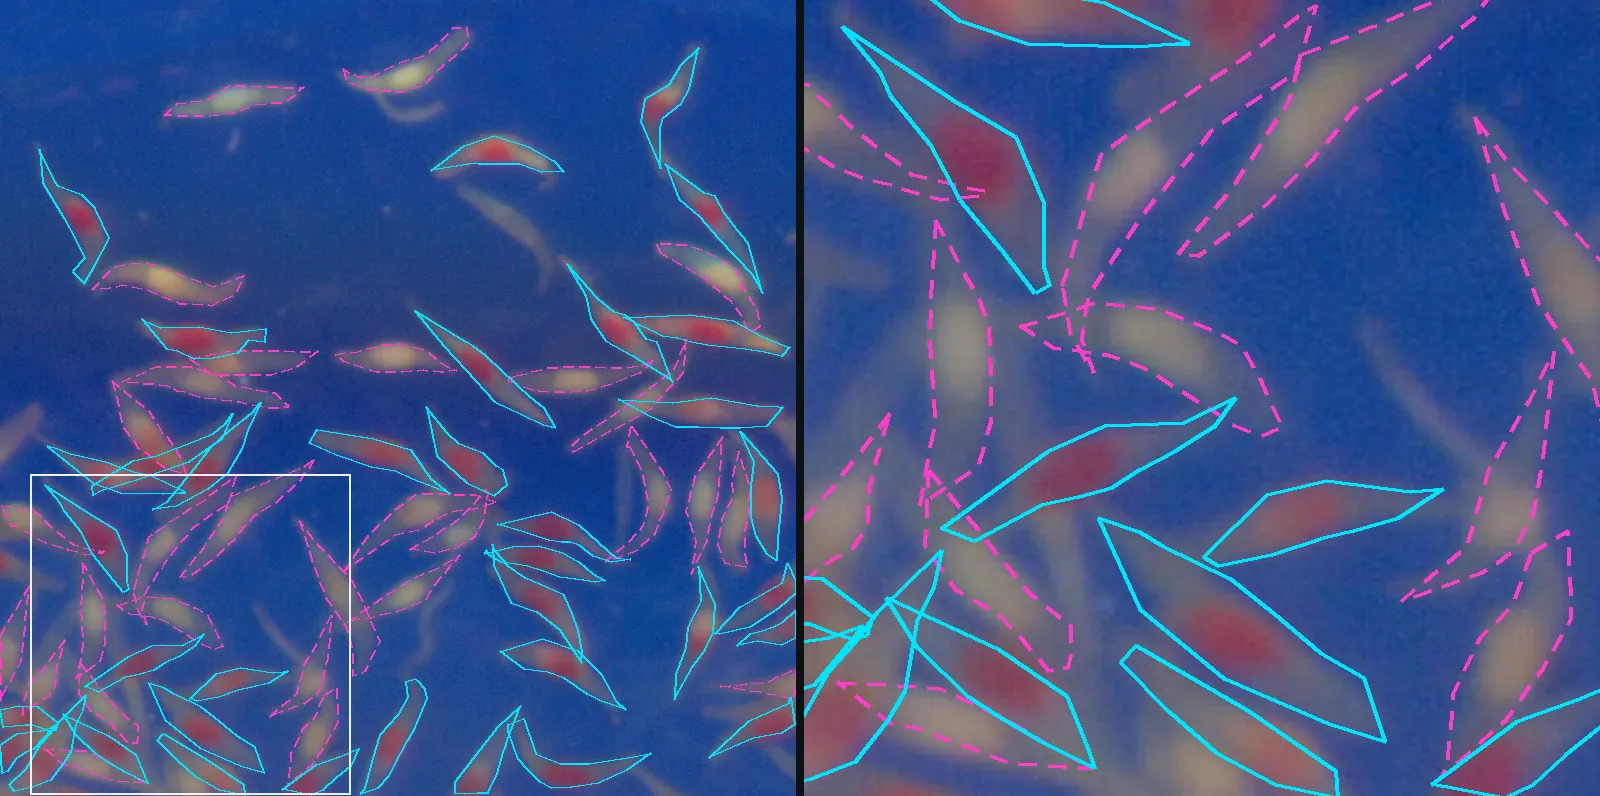
A figura 1 é um recorte real de uma placa de tetrazólio de orquídea, escaneada sobre papel azul. O sal de tetrazólio entra incolor, e o tecido que respira o transforma num composto vermelho. Por isso o embrião das sementes vivas aparece como uma mancha vermelha dentro da casca clara. A química está no post Embrião vermelho respira e, em movimento, na animação do tetrazólio.
Os polígonos vêm da anotação do conjunto público e são grosseiros, com poucos vértices na maioria (a mediana é 11). Eles dizem onde está cada semente e que classe a pessoa que anotou deu a ela. Os 38 recortes têm 1.614 sementes anotadas: 926 viáveis e 688 inviáveis. A anotação também é uma leitura, e alguém que anotasse de novo decidiria algumas fronteiras de outro jeito. O post Não basta contar discute isso com sementes de soja.
De RGB para CIELAB
A câmera e o scanner guardam cada pixel como três números, R, G e B, de 0 a 255. Eles dizem quanto acender de vermelho, de verde e de azul numa tela, e misturam duas coisas que a análise quer separadas: quanto o pixel é claro e de que cor ele é. A mesma semente na sombra e na luz tem RGB bem diferente.
O CIELAB troca os três números por outros três. L* é a claridade, de 0 (preto) a 100 (branco). a* vai do verde (negativo) ao vermelho (positivo). b* vai do azul (negativo) ao amarelo (positivo). A conta tem três passos: desfazer a curva de gama do sRGB, levar o resultado ao espaço XYZ com uma matriz fixa e tirar raiz cúbica e diferenças [1]:
Aqui \(f(t) = t^{1/3}\), trocada por uma reta perto de zero, e \((X_n, Y_n, Z_n)\) é o branco de referência, a luz do dia D65. Y é a luminância e pesa sobretudo o verde. X pesa mais o vermelho. Quando o vermelho domina o verde, \(X/X_n\) passa \(Y/Y_n\) e a* fica positivo. É isso que a* mede: o quanto o pixel é mais vermelho do que verde.
| Pixel real | sRGB | linear | XYZ | L* | a* | b* |
|---|---|---|---|---|---|---|
| embrião | 119, 61, 85 | 0,184 0,047 0,091 | 0,109 0,079 0,095 | 33,8 | 28,4 | −3,0 |
| papel | 6, 58, 153 | 0,002 0,042 0,319 | 0,073 0,054 0,308 | 27,7 | 24,3 | −55,8 |
Tabela 1. Dois pixels da placa, um do embrião de uma semente viável e um do papel, passo a passo. O vermelho puro do sRGB, (255, 0, 0), dá L* 53,24, a* 80,09 e b* 67,20, o valor de referência que confere a conta.
A tabela tem uma surpresa. O papel azul também tem a* positivo, 24,3. O azul do CIELAB puxa para o violeta, e violeta tem vermelho. O que separa o papel do embrião é b*: −55,8 contra −3,0. A cor de um pixel é o par (a*, b*), e o eixo a* sozinho só funciona enquanto o fundo não confunde.
A cor média de cada semente
Para cada semente, a conta passa por todos os pixels dentro do polígono, converte cada um para CIELAB e tira a média de L*, a* e b*. A figura 2 mostra seis sementes do conjunto, três de cada classe, escolhidas perto dos quartis de a* da sua classe. A faixa colorida embaixo de cada uma é a cor média.
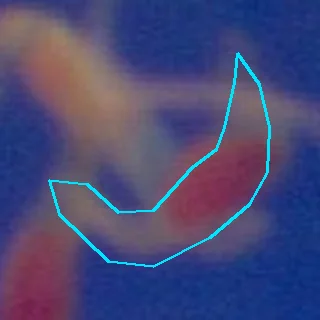
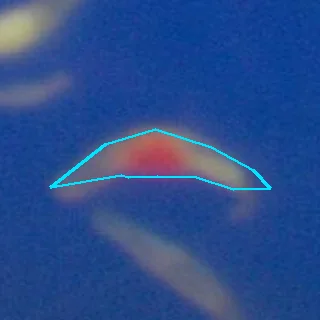
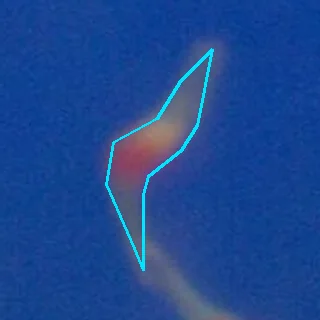
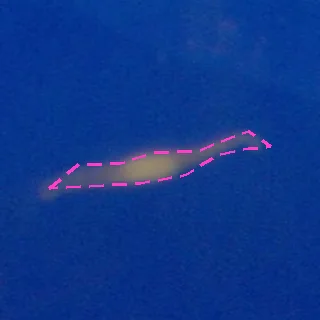
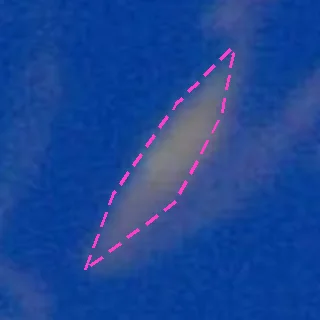
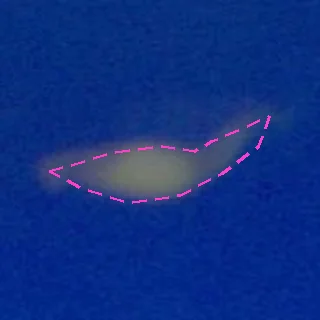
A cor média é uma mistura. O polígono pega o embrião, a casca clara e uma borda de papel azul, e a média puxa tudo para um violeta acinzentado. Mesmo assim, a classe aparece: a mediana de a* é 16,5 nas viáveis e 4,8 nas inviáveis. O instrumento abaixo põe as 1.614 sementes no plano (a*, b*) e deixa você escolher um limiar.
Instrumento · um limiar em a*
Cada marca é uma semente real, na sua cor média. círculo cheio ciano: rótulo viável. anel magenta: rótulo inviável. anel laranja: a proposta do limiar discorda do rótulo. Dados reais
Com o limiar em 9,4, o que mais concorda com o rótulo nestas sementes, a regra concorda com ele em 1.510 das 1.614 (93,6%). Esse número é otimista, porque o limiar foi escolhido olhando as mesmas sementes. Escolhendo o limiar em 37 recortes e testando no que ficou de fora, um recorte de cada vez, a concordância fica em 1.502 (93,1%). Sobram 104 sementes em que a regra e o rótulo discordam, e 78 delas estão a menos de 3 unidades de a* da linha. É nelas que a conferência de quem analisa rende mais.
A matiz é um ângulo
Dá para descrever o mesmo par (a*, b*) por distância e ângulo. A distância até a origem é a croma, \(C^* = \sqrt{a^{*2} + b^{*2}}\), o quanto a cor é viva. O ângulo é a matiz, \(h = \operatorname{atan2}(b^*, a^*)\). Zero grau aponta para +a*, o vermelho. 90° aponta para o amarelo, 180° para o verde e 270° para o azul. O vermelho do tetrazólio fica perto de 0° e às vezes passa um pouco para o lado do magenta, perto de 360°.
Aí mora a armadilha. 359° e 1° são quase a mesma cor, mas a média aritmética dos dois é 180°, o verde. Numa semente vermelha, parte dos pixels cai logo acima de 0° e parte logo abaixo de 360°, e a média aritmética aponta para o lado oposto do círculo.
A conta certa trata cada matiz como uma seta de comprimento 1, soma as setas e lê o ângulo da soma [2]:
\(\bar R\) vai de 0 a 1 e diz o quanto as matizes concordam. Perto de 1, apontam todas para o mesmo lado; perto de 0, se espalham pelo círculo e a média não quer dizer nada. Nas 926 sementes viáveis, a média aritmética da matiz dos pixels cai a mais de 90° da circular em 192, e a mais de 45° em 366. Nas 688 inviáveis, mais pálidas, isso acontece em 73. A armadilha pega justamente a classe que interessa.
Tem um atalho que vale guardar. Tirar a média de a* e de b* e só depois calcular o ângulo dá exatamente a média circular, com cada pixel pesando pela sua croma. Nas 1.614 sementes, as duas contas diferem em menos de \(10^{-13}\) grau, que é arredondamento do computador. Quem guarda a média de a* e de b* já tem a matiz certa.
Instrumento · média aritmética e média circular
Arraste os pontos sobre o círculo. Gire o conjunto devagar: quando um ponto cruza o 0°, ele pula de uma ponta à outra da reta e a média aritmética salta junto, enquanto a circular gira sem tropeço. Os pixels reais são 72 sorteados de cada semente, com a matiz do CIELAB.
O que a cor decide, e o que não decide
A cor média separa bem estas duas classes porque, neste conjunto, viável quer dizer embrião vermelho e inviável quer dizer embrião claro. É um critério de protocolo, que vale para o material e para quem o definiu. A norma pede mais.
O tetrazólio é um teste topográfico: a leitura olha onde está o tecido corado e o não corado e quanto do embrião cada um ocupa [3]. Nas Regras para Análise de Sementes, o capítulo do tetrazólio traz, espécie por espécie, desenhos e fotos de embriões viáveis e não viáveis, e o que muda de um para o outro é sobretudo a posição e a extensão das áreas sem cor [4]. Uma área pálida na ponta de um cotilédone pode ser tolerada; a mesma área no eixo do embrião condena a semente. Uma média não tem posição.
Também ficam de fora a intensidade, já que vermelho escuro demais costuma indicar tecido em deterioração, a firmeza do tecido, que só o toque avalia, e a luz da foto: sem um cartão cinza na cena, o mesmo vermelho muda de uma sessão para a outra. Dizer onde está a cor pede o contorno da semente e uma posição dentro dele, e isso já é assunto da trilha de forma.
Em orquídea, o teste tem passos próprios antes da leitura. Sem um pré-condicionamento em sacarose, o tetrazólio subestima a viabilidade [6]; nas espécies de tegumento escuro o embrião só aparece com um clareamento depois da coloração, e nas de carapaça grossa o sal só entra com uma escarificação antes [7]. A leitura em si pode ser feita na imagem: em sementes de braquiária, ler o tetrazólio na imagem de scanner a 1200 dpi deu o mesmo resultado que ler no estereomicroscópio [8].
Há uma medida do tamanho desse limite. Num conjunto público de soja depois do tetrazólio, descrito por centenas de atributos globais de cor e textura, o acerto balanceado parou perto de 0,67 por mais sementes que se juntassem. Atributos globais jogam fora o onde. A conta está na página de aprofundamento.
Mais de duas classes
Viável e inviável é o par mais comum, mas muitos protocolos usam mais classes. Em orquídea, é comum contar à parte a semente vazia, sem embrião. Na leitura de vigor, as sementes viáveis se dividem em classes pelo tipo e pela posição do dano. Em pureza e qualidade, as classes são outras: íntegra, quebrada, imatura, manchada.
Com três ou mais classes aparece um problema que duas classes não têm. Se as classes ficam enfileiradas no espaço dos descritores, do embrião mais claro ao mais vermelho, por exemplo, o classificador linear mais simples, o de mínimos quadrados, pode nunca escolher a classe do meio [5]. Ela some, por mais separada que esteja das vizinhas. A demonstração, os remédios e o que se mediu em 88 espécies estão em Quando a reta esconde uma classe.
No SeedCounter
No SeedCounter
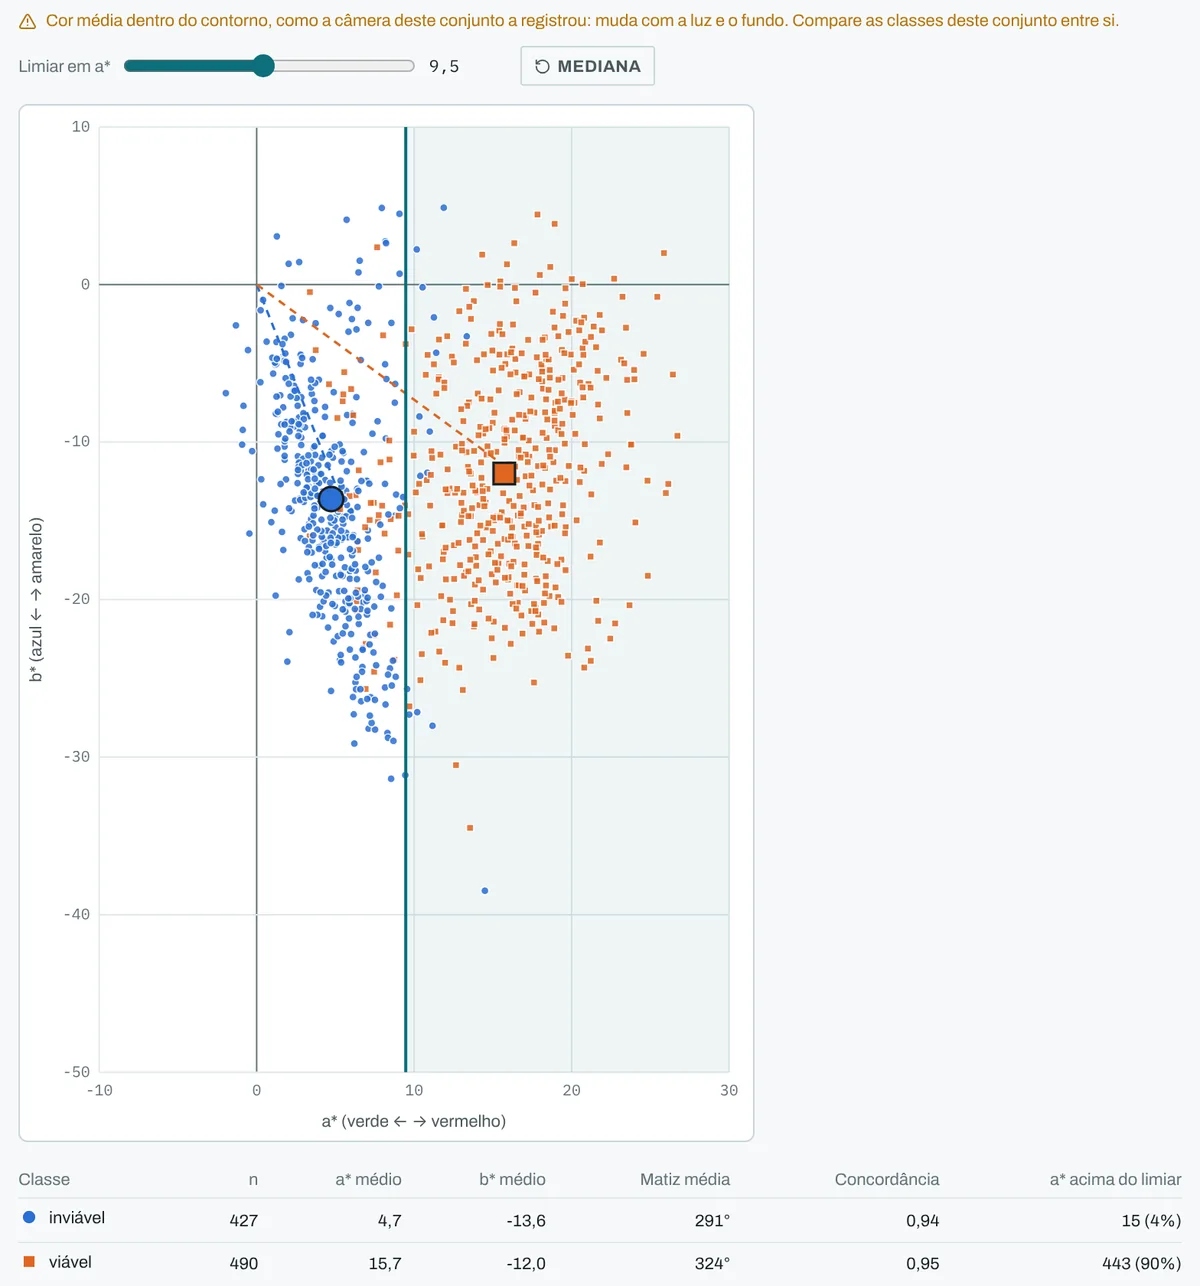
Cada semente sai com a cor média dentro do contorno, em RGB, HSV e CIELAB, junto com as medidas de forma. A máquina propõe a classe, viável e inviável ou as classes do seu protocolo, e a proposta só vira dado depois que você confere. Viável tem contorno contínuo e inviável, tracejado, para a classe continuar legível sem depender da cor. Na versão 4.0 a matiz média de cada classe é a média circular, e o hub de datasets ganhou a vista Cor a* × b*, com um ponto por semente, o centro de cada classe e um limiar em a* para mexer.
Onde falha
O a* depende da luz, do sensor e do balanço de branco. O limiar de 9,4 vale para estas 38 imagens, com este scanner e este papel; em outra bancada ele precisa ser medido de novo, com algumas placas conferidas à mão. Os polígonos grosseiros põem papel dentro da média, e um contorno mais justo mudaria os números. E a concordância é com o rótulo de quem anotou, que também é uma leitura.
Dados
Conjunto "Sementes de Orquídeas" v8, Roboflow Universe (universe.roboflow.com/sementes-de-orqudea/sementes-de-orquideas), licença CC BY 4.0. Contas desta página: os 38 recortes de validação e os seus 1.614 polígonos; conversão sRGB, XYZ (D65, observador 2°) e CIELAB pixel a pixel; escala só em pixels.
Aprofundar
Quando a reta esconde uma classe
Mínimos quadrados com K classes, a demonstração do mascaramento, LDA, logística, SVD e o que se mediu em 88 espécies.
●○○ Ver · animaçãoO tetrazólio em movimento
Doze sementes-modelo cortadas, coradas e conferidas uma a uma.
●●○ Entender · trilhaForma
Contorno, descritores e a semente média: o que a forma mede e onde ela para.
Para ler mais
- ISO/CIE 11664-4:2019. Colorimetry. Part 4: CIE 1976 L*a*b* colour space. Norma internacional, 1ª edição, 2019.
- Fisher N.I. (1993). Statistical Analysis of Circular Data. Cambridge University Press. doi:10.1017/CBO9780511564345
- Moore R.P. (1985). Handbook on Tetrazolium Testing. International Seed Testing Association, Zurique.
- Regras para Análise de Sementes (2025). Capítulo 5, teste de tetrazólio, com guias e fotos por espécie. wikisda.agricultura.gov.br
- Hastie T., Tibshirani R., Friedman J. (2009). The Elements of Statistical Learning, 2ª ed., capítulo 4. Springer. doi:10.1007/978-0-387-84858-7
- Hosomi S.T., Santos R.B., Custódio C.C., Seaton P.T., Marks T.R., Machado Neto N.B. (2011). Preconditioning Cattleya seeds to improve the efficacy of the tetrazolium test for viability. Seed Science and Technology 39(1), 178–189. doi:10.15258/sst.2011.39.1.15
- Custódio C.C., Marks T.R., Pritchard H.W., Hosomi S.T., Machado-Neto N.B. (2016). Improved tetrazolium viability testing in orchid seeds with a thick carapace (Dactylorhiza fuchsii) or dark seed coat (Vanda curvifolia). Seed Science and Technology 44(1), 177–188. doi:10.15258/sst.2016.44.1.17
- Custódio C.C., Damasceno R.L., Machado Neto N.B. (2012). Imagens digitalizadas na interpretação do teste de tetrazólio em sementes de Brachiaria brizantha. Revista Brasileira de Sementes 34(2), 334–341. doi:10.1590/s0101-31222012000200020
A cor de cada semente, na sua placa.
Carregue uma placa de tetrazólio, veja a classe proposta e confira semente por semente.